

Cancer Cell|王斌/白凡/王振宁/卞修武团队揭示胃癌 "酸驱动免疫耐药" 新机制:FOSL2→质子泵→酸化 TME→CD8⁺T 耗竭
2026年10月6日,陆军军医大学/金凤实验室 王斌 教授、 卞修武 院士,北京大学生物医学前沿创新中心 白凡 教授,中国医科大学 王振宁 教授作为共同通讯作者,在 Cancer Cell 上发表了题为 Chromatin accessibility trajectories reveal precancerous epigenetic priming and an acid-driven immunotherapy-resistant gastric cancer subtype 的研究论文。绘制了覆盖人类胃癌多阶段演进的大规模染色质可及性全景图谱。该研究纳入439例患者,收集650份胃癌及多阶段病变组织, 整合配对的bulk ATAC-seq与bulk RNA-seq数据,利用scATAC-seq和snRNA-seq数据 ,构建了目前规模最大的胃癌多阶段染色质可及性数据集与表观调控网络,通过胃癌类器官模型、基因编辑小鼠胃癌模型及胃癌临床试验数据,开展多维度机制解析与验证。
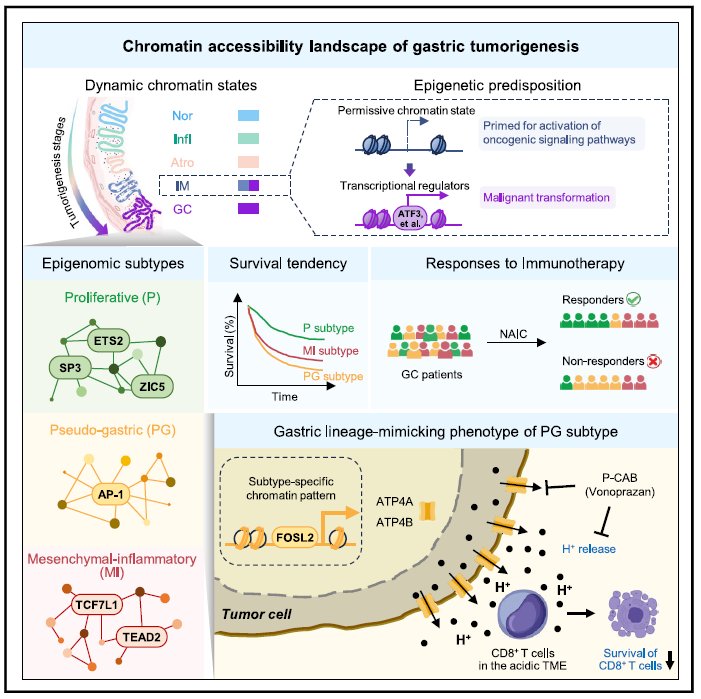
科研价值汇总
01 癌前层面 :绘制胃癌完整多阶段染色质可及性图谱, 阐明肠上皮化生的表观预激活机制 ,解释为什么部分肠上皮化生高危进展胃癌,为胃癌早筛风险分层提供新思路。
02 肿瘤分型层面 :跳出传统转录组,用染色质可及性建立胃癌 3 种表观亚型, 可以独立预测新辅助免疫治疗疗效,弥补 TCGA 分型不足。
03 耐药新机制 :报道一种全新免疫耐药机制: 肿瘤细胞自身重编程胃分泌谱系,主动泌酸构建酸性免疫抑制微环境。
04 临床转化潜力 : 提出 “老药新用”,伏诺拉生可逆转 PG 亚型胃癌的免疫耐药 ,为这部分难治胃癌患者提供低成本、快速可落地的联合治疗策略。
·主要研究结果 ·
1. 跨越胃癌发生多个病理阶段的大规模染色质可及性图谱
为解析胃肿瘤发生过程中的表观遗传进化特征,纳入439 例受试者的 650 份组织样本,覆盖胃癌癌变连续五阶段:正常胃黏膜(Nor)、非萎缩性胃炎(Infl)、萎缩性胃炎(Atro)、肠上皮化生(IM)及胃癌(GC)(图 1A)。将鉴定得到的染色质开放区域与 ENCODE、Roadmap进行比对:正常胃黏膜样本的开放染色质区域中,64.19% 可与公共数据集重叠,另有 35.81% 为本研究特有的区域(图 1B)。胃癌样本的 ATACseq 峰集与 TCGASTAD 队列的重叠比例为 42.14%,提示 57.86% 的调控元件为新发现位点(图 1B)。综上,构建了一套覆盖胃肿瘤发生全病理阶段的大规模表观组学资源。
对来自 3 例患者的 9 份连续病变样本开展 scATAC-seq,共获得 47735 个细胞核,涵盖上皮、免疫及基质细胞(图 1A)。肠型胃癌(IGC)的发生遵循经典多阶段演进模式,肠上皮化生(IM)是其特异性癌前病变,而弥漫型胃癌(DGC)并不经过该阶段。与之吻合,相关性分析显示 IM 与 IGC 染色质特征相近,但和 DGC 差异显著(图 1C);两两比对同样证实 IM 与 IGC 存在高度相似性(图 1D)。进一步识别出沿癌变连续体动态变化的 24 841 个 ATAC 峰;无监督聚类得到 10 个主要峰簇(C1–C10),与各病理阶段特征匹配(图 1F),直观反映了胃癌多阶段演进的上皮染色质可及性动态重塑过程。通路富集分析提示生物学功能发生剧烈重编程:胃上皮固有功能逐步丢失,促癌相关事件持续激活(图 1G)。
C1–C5 富集的高置信 TF 中,超过三分之一(8/21)属于 FOX 与 GATA 家族,已有研究提示该家族是胃上皮分化的关键调控因子;而 C6–C10 的核心 TF 包含 ETS2、SP3以及 AP1 家族成员等已知致癌调控因子(图 1H)。综上,这套高分辨率染色质可及性图谱解析出一条连贯的表观遗传演化轨迹:阶段性动态表观开关有序调控不同时期的基因网络,驱动胃谱系身份特征丢失、细胞获得肿瘤潜能,推动渐进式癌变。
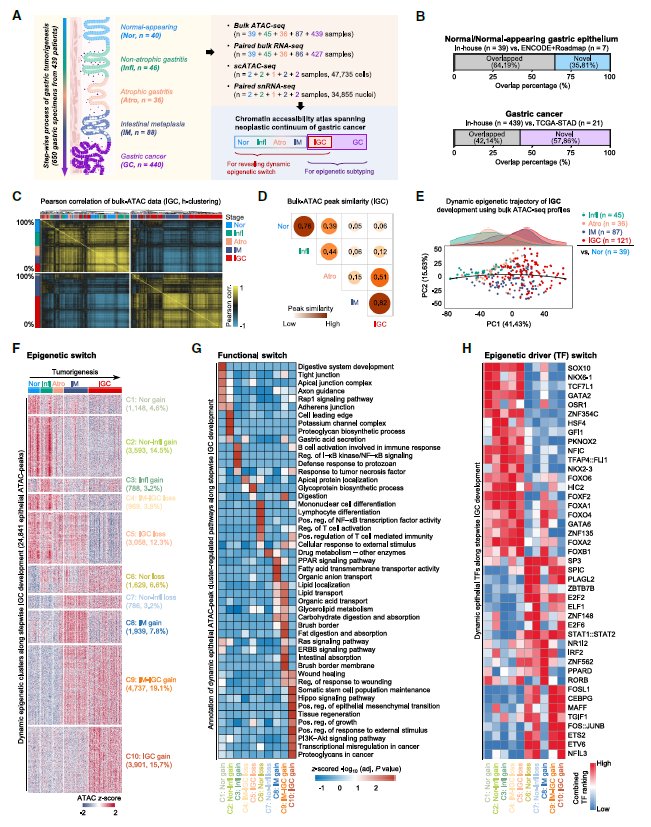
图1 跨越胃癌发生多个病理阶段的大规模染色质可及性图谱
2. IM存在类癌染色质可及性模式,具备肿瘤启动的预激潜能
基于 scATAC-seq的30900 个上皮细胞,从中鉴定出 8 种染色质状态,其中Metaplastic-tumor亚群在IM与IGC中均可检出(图 2A、2B)。随着癌变进展,胃固有谱系逐步衰减,而Metaplastic-tumor细胞占比显著扩增(图 2C)。不仅印证了 bulk ATAC-seq 所揭示的上皮细胞转化背后的染色质动态重塑规律(图 1F),更进一步说明:该共享状态早在 IM 阶段即已出现,并持续保留至胃癌阶段。为进一步刻画各类细胞染色质状态的特征,将 bulk ATAC-seq映射至 scATAC-seq,结果显示,C1 向 C10 的时序转变,与不同病理阶段细胞的染色质状态高度吻合(图 1F、2D)。其中富集于 C9 的Metaplastic-tumor细胞,是 IM 与 IGC 表观基因组高度相似的核心基础(图 1C、1D、1F、2D)。
尽管 IM 与 IGC 存在表观组相似性,但转录组特征存在明显差异。为阐释这种表观基因组转录组的解耦现象,将 C9 峰簇进一步拆分为三类调控状态:(1)Permissive state:在 IGC 中高表达,但在 IM 中低表达;(2)Synchronous state:在 IM 和 IGC 中表达同步上调,与其染色质开放状态匹配;(3)Inverse state:在两个阶段表达均下调(图 2E)。在Permissive state下,染色质可及性在 IM 和 IGC 阶段均已升高,但对应基因的转录激活存在明显滞后,直到IGC 才充分启动表达(图 2F)。功能富集提示,Permissive state调控的靶基因参与多种肿瘤启动相关事件(图 2G);Synchronous state主要调控肠谱系特征基因,而Inverse state则与组织重塑过程相关。综上,表观基因组与转录组之间的不一致主要来源于Permissive state:IM 提前建立类癌性的表观开放构型,预先为致癌通路激活营造了染色质可及环境。
进一步筛选出调控许可染色质状态的关键因子,如ATF3、CDX2、HNF4A与 KLF5(图 2H)。ATF3 调控子在 IGC 中高度激活,在 IM 中呈中等程度上调(图 2I)。免疫组化证实,人 IGC 组织中 ATF3水平显著上调(图 2J)。在 IM 样类器官中高表达 ATF3,可显著增强致瘤能力(图 2K)。与之相对,胃上皮特异性敲除 Atf3,能够有效抑制胃肿瘤发生(图 2L)。临床数据显示,胃癌组织 ATF3 上调与疾病进展及不良预后显著相关(图 2M)。
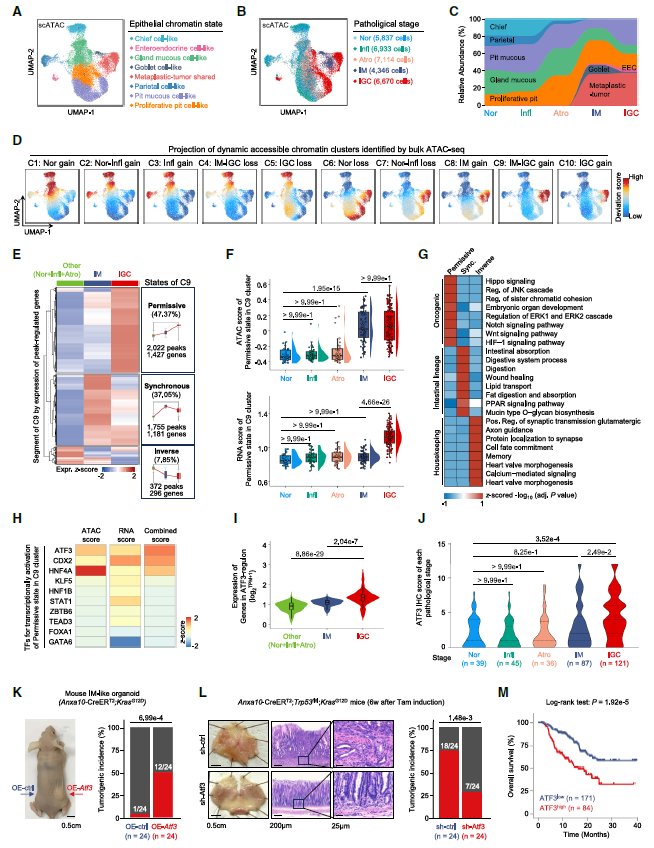
图2 IM存在类癌染色质可及性模式,具备肿瘤启动的预激潜能
3. 晚期胃癌染色质可及性特征界定三种表观基因组亚型
胃肿瘤发生进程中,样本间染色质可及性谱的相似性逐步下降,胃癌阶段的异质性达到最高水平(图 3A)。对 439 例肿瘤样本进行kmeans 聚类,鉴定得到三种独立亚型,与分组结果高度吻合(图 3B)。GSEA 富集识别出每一类亚型特有的核心表观遗传驱动通路与标志物:(1)P亚型富集细胞周期调控通路;(2)PG亚型以基因异常激活为特征;(3)间质炎症型(MI)亚型富集上皮间质转化(EMT)与炎症应答相关基因(图 3C、3D)。结合调控度、染色质可及性与基因表达三项指标综合排序,筛选得到各亚型的关键转录因子(图 3E)。P 亚型排名前三的转录因子均为细胞增殖的强效驱动因子;PG 亚型的核心转录因子以AP1家族基因为主;MI 亚型的核心因子则主要调控 EMT 与炎症反应。
进一步分析表观基因组亚型和患者预后的关联。P 亚型患者预后最优,PG 亚型与 MI 亚型患者生存期更短(图 3F)。该预后差异在 TCGASTAD与 ACRG独立队列中得到验证(图 3G、3H)。TCGA 中的 GS 亚型、CIN 亚型通常提示不良预后、治疗耐受率更高;即便在这两个高危亚组内部,表观基因组分型依然可以进一步区分预后,其中 PG、MI 亚型仍对应更差的生存结局(图 3I)。综上,表观基因组分型独立于现有分子分型,可为临床预后评估提供重要补充。
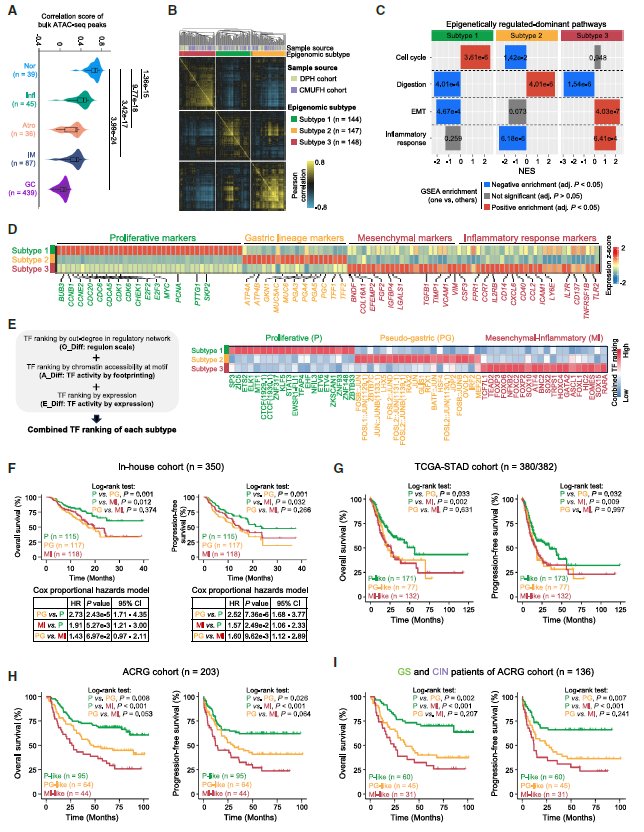
图3晚期胃癌染色质可及性特征界定三种表观基因组亚型
4. PG亚型表现出先天免疫耐药,对新辅助免疫治疗不敏感
越来越多证据提示,失调的肿瘤表观基因组可重编程TME的免疫图谱,进而诱导免疫抑制,削弱抗肿瘤免疫应答。基于此,进一步解析各表观基因组亚型的 TME 免疫特征。对独立队列转录组数据开展反卷积分析,发现不同表观亚型的 TME 细胞组分存在显著差异。尤为突出的是,PG 亚型肿瘤微环境中 CD8⁺T 细胞占比持续偏低(图 4A、4B)。
鉴于 CD8⁺T 细胞是实体瘤免疫检查点阻断(ICB)应答的核心决定因素,依托一项胃癌新辅助免疫化疗(NAIC)II 期临床试验队列,探究不同亚型间 CD8⁺T 细胞浸润差异是否对应免疫治疗响应差别(图 4 C)。不同亚型的MPR(主要病理缓解)差异显著,P 亚型患者更易获得更高程度的缓解,MI 亚型呈现中等程度缓解,而绝大多数 PG 亚型无法达到缓解(图 4D、4E)。多队列验证结果一致:P 样、MI 样亚型肿瘤的病理缓解比例显著更高,而 PG 亚型肿瘤倾向于治疗耐药(图 4G、4G、4H)。综上,表观基因组分型可与 TCGA 分型体系互补,有望用于指导胃癌免疫治疗筛选,P 亚型与 MI 亚型属于免疫治疗获益人群,而 PG 亚型存在固有免疫耐药特征。
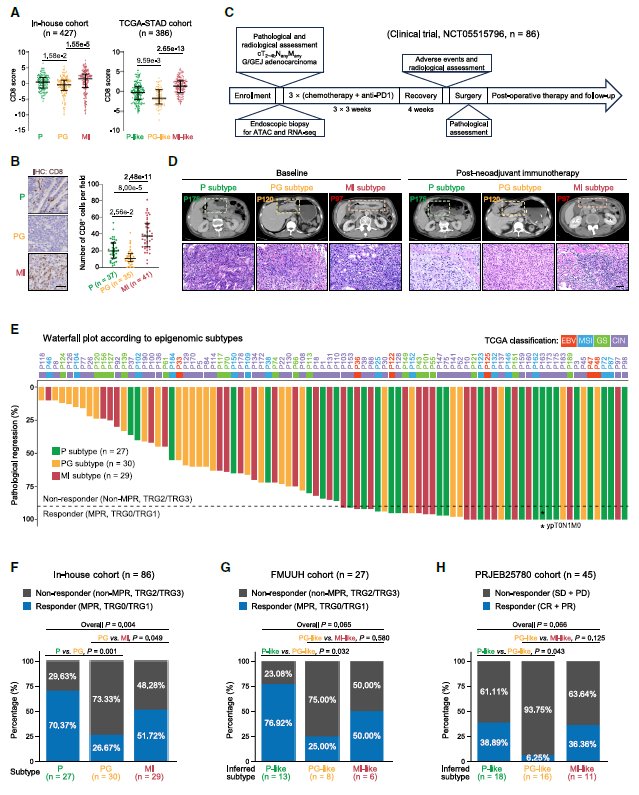
图4 Pseudo-gastric subtype先天免疫耐药,对新辅助免疫治疗不敏感
5. PG亚型借胃谱系模拟表型,经酸驱动机制塑造免疫抑制性肿瘤微环境
PG 亚型的免疫治疗耐药可能源于其内在的表观遗传状态。与其他亚型不同,PG 亚型肿瘤在胃谱系分化基因的调控元件上呈现开放染色质,覆盖胃蛋白酶原(PGA3、PGA4、PGA5)、H⁺/K⁺ATP 酶质子泵(ATP4A、ATP4B)、胃黏蛋白(MUC5AC、MUC6)以及嗜铬粒蛋白(CHGA)等,相应基因表达显著升高(图 3D、5A、5B)。鉴于正常胃壁细胞通过 ATP4A/ATP4B 释放质子(H⁺),进一步分析这类癌细胞是否具备泌酸功能。免疫检测显示,H⁺/K⁺ATP 酶转运蛋白在肿瘤中呈异质性表达,但主要富集于 PG 亚型癌细胞,并导致该亚型肿瘤微环境pH 值明显降低(图 5C、5D)。相应地,PG 亚型患者来源类器官的培养上清液中可稳定检测到 H⁺的产生,而 P 亚型、MI 亚型类器官均无此现象(图 5E)。综上,PG 亚型胃癌具有独特表型,通过释放 H⁺造成肿瘤微环境酸化。
这一表型很可能与免疫抑制相关,因为 H⁺的过度分泌会增加细胞外酸度,诱导 CD8⁺T 细胞功能无能或凋亡。在无酸碱缓冲液的基础培养基中培养原发胃癌类器官后,自体 CD8⁺T 细胞的活力仅在与 PG 癌细胞共培养时受损,非 PG 癌细胞并无此效应(图 5F);而补充酸碱缓冲液中和 H⁺后,CD8⁺T 细胞存活得以恢复(图 5E、5F)。相应地,PG 癌细胞以依赖低 pH 的方式对自体 CD8⁺T 细胞的细胞毒性更具抵抗力(图 5G)。这些结果共同表明,PG 癌细胞通过主动分泌 H⁺抑制 CD8⁺T 细胞功能。此外,在 PG 样癌细胞中特异性耗竭 Atp4a/Atp4b、抑制 H⁺释放,可有效挽救共培养体系中 CD8⁺T 细胞的死亡(图 5H、5I),并使 PG 样癌细胞对 CD8⁺T 细胞的抗原特异性杀伤恢复敏感(图 5J)。
为模拟临床新辅助免疫化疗,建立移植 PG 样胃癌类器官的原位小鼠模型,随后给予免疫治疗(抗 PD1 联合奥沙利铂)。单用组合治疗对 PG 样肿瘤的抑制作用有限;而在耗竭 Atp4a/Atp4b、升高瘤内 pH 的基础上,瘤内 CD8⁺T 细胞浸润显著增加,免疫治疗疗效明显增强(图 5K、5L)。临床层面,肿瘤中 ATP4A/ATP4B 蛋白水平与浸润 CD8⁺T 细胞数量呈负相关,进一步佐证其免疫抑制作用(图 5M)。综上,PG 亚型 “胃谱系模拟” 表型部分源于 H⁺/K⁺ATP 酶上调及质子外排增加,由此构建酸性肿瘤微环境,抑制瘤内 CD8⁺T 细胞,最终导致免疫治疗耐药。
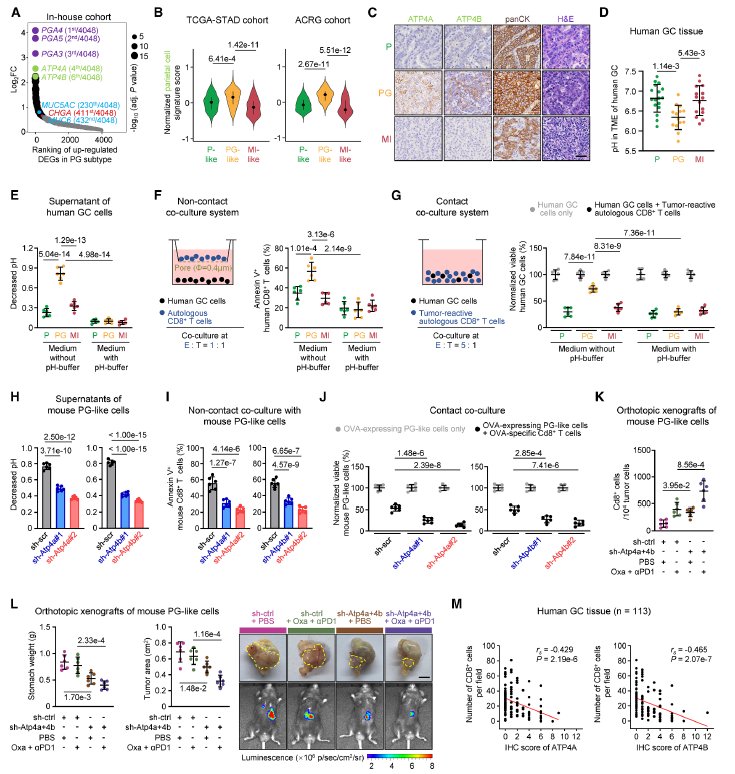
图5 PG亚型借胃谱系模拟表型,经酸驱动机制塑造免疫抑制性肿瘤微环境
6. FOSL2 是PG亚型胃癌谱系模拟表型的关键驱动因子
为进一步锁定维持 “胃谱系模拟” 表型的关键 TF,依据表达水平、染色质可及性与结合潜力三重标准,在脊椎动物 TF 中开展系统筛选(图 6A),最终获得 47 个候选因子(图 3E、6B)。TF 活性验证表明,FOSL2 在这些癌细胞中呈现高度激活(图 6C)。PG 亚型中 FOSL2 的表达与 ATP4A、ATP4B 呈正相关(图 6D)。FOSL2 敲除可下调 H⁺/K⁺ATP 酶转运蛋白(图 6E),并显著减少人及小鼠胃癌类器官的 H⁺产生(图 6F)。相应地,在小鼠 PG 样癌细胞中敲低 Fosl2,可恢复CD8⁺T 细胞活力(图 6G),并使这些癌细胞重新对抗原特异性 T 细胞介导的杀伤敏感(图 6H)。与之相反,过表达 Fosl2,会上调 Atp4a 与 Atp4b 的表达,将泌酸表型转移给原本不泌酸的癌细胞(图 6I、6J);在无酸碱缓冲的条件下,这一表型转化会促进共培养 CD8⁺T 细胞的死亡(图 6K、6L)。值得注意的是,补充酸碱缓冲液中和 H⁺后,上述表型均可被逆转(图 6J–6L),进一步证明肿瘤固有的 FOSL2 通过诱导细胞外酸化来抑制 CD8⁺T 细胞。此外,小鼠 PG 样癌细胞中 Fosl2 的缺失可显著增加瘤内 CD8⁺T 细胞浸润,并延缓肿瘤生长(图 6M、6N)。综上所述,FOSL2通过加剧肿瘤微环境酸化,损害 T 细胞介导的抗肿瘤免疫。
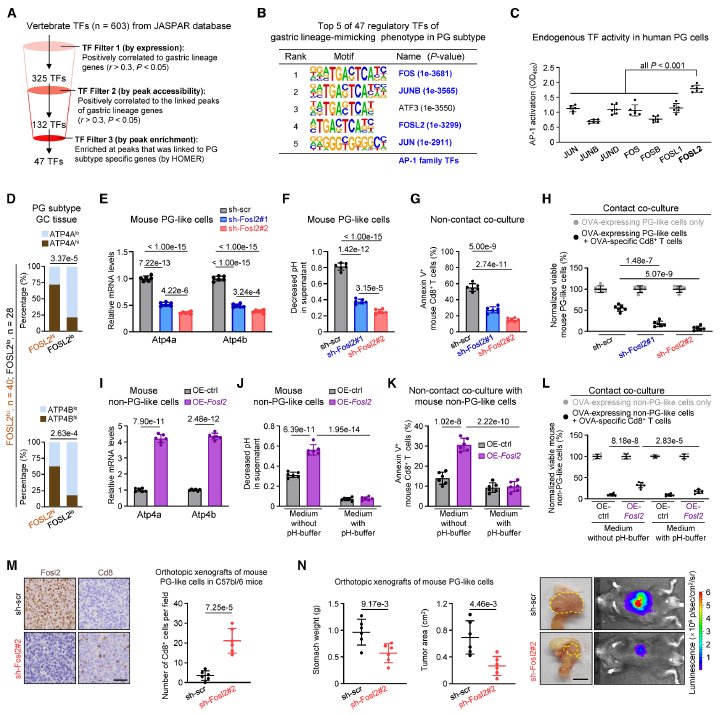
图6 FOSL2 是PG亚型胃癌谱系模拟表型的关键驱动因子
7. 阻断癌细胞质子外排,可增敏小鼠与人类的胃癌新辅助免疫治疗
进一步评估,靶向 “胃谱系模拟” 表型是否能使 PG 亚型对免疫治疗恢复敏感。结果显示,敲低Fosl2 可提高细胞外 pH、增加瘤内 CD8⁺T 细胞浸润,从而显著增强治疗效果(图 6F、7A、7B)。遗憾的是,目前尚无靶向 FOSL2 的可用药物;且 FOSL2 在人体正常组织中广泛表达,因此转向钾离子竞争性酸阻滞剂(PCAB)。实验证实,伏诺拉生(Vonoprazan)是一种钾离子竞争性酸阻滞剂,能有效抑制小鼠 PG 样胃癌类器官的 H⁺释放(图 7C),并随之增强 CD8⁺T 细胞的存活及抗原特异性细胞毒性作用(图 7D、7E)。相应地,给予 VPZ 可显著增加瘤内 CD8⁺T 细胞浸润,并增强耐药肿瘤体内联合治疗的疗效(图 7F、7G)。因此,通过 PCAB 抑制 H⁺外排,有望使免疫耐药的 PG 亚型对治疗恢复敏感。
利用来源于 PG 亚型患者的免疫治疗耐药类器官,观察到 VPZ可显著减少癌细胞的 H⁺外排,进而提高共培养体系中 CD8⁺T 细胞的存活率(图 7H、7I);VPZ 处理还促进了肿瘤反应性 CD8⁺T 细胞杀伤 PG 亚型癌细胞(图 7J)。更重要的是,在新辅助免疫化疗期间联用 VPZ 的 PG 亚型患者,其肿瘤病理缓解比例更高(图 7K)。据统计,有 VPZ 用药史的患者中 55.6% 被判定为应答者,而未用 VPZ 的患者仅为 14.3%(图 7L);服用 VPZ 的 PG 亚型患者瘤内 CD8⁺T 细胞浸润更为丰富(图 7M)。综上,VPZ 有望减轻 PG 亚型的免疫治疗耐药,其作用机制可能在于抑制肿瘤 H⁺释放、恢复浸润 CD8⁺T 细胞的功能。
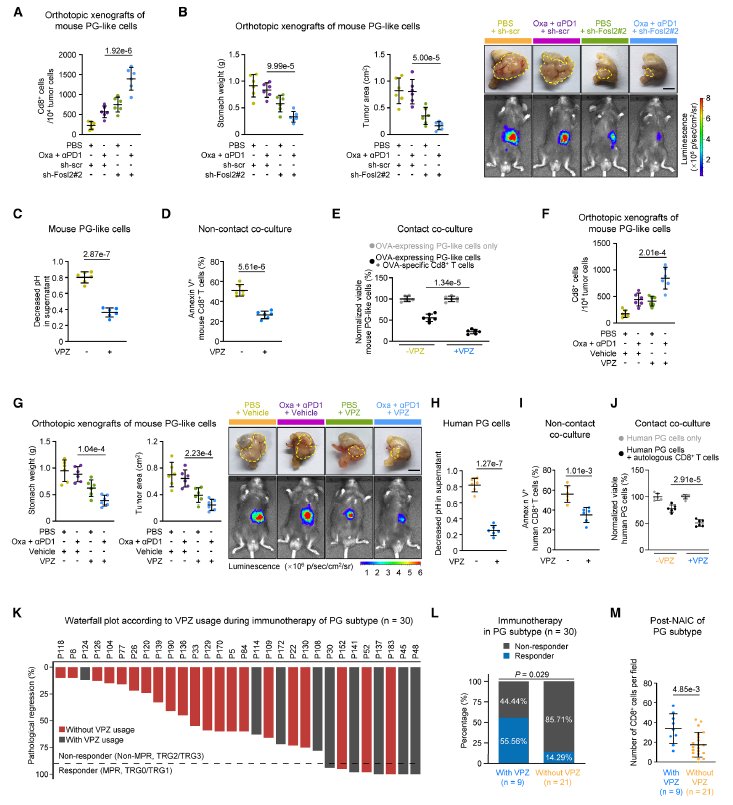
图7 阻断癌细胞质子外排,可增敏小鼠与人类的胃癌新辅助免疫治疗
参考文献 :Wang et al., Chromatin accessibility trajectories reveal precancerous epigenetic priming and an acid-driven immunotherapy-resistant gastric cancer subtype. Cancer Cell. 2026. https://doi.org/10.1016/j.cell.2026.09.001
和元双十一 · 组学狂欢ing
和元生物CRO多组学服务
和元生物提供多组学服务(如转录组、蛋白组、代谢组、微生物组等)和单细胞及空间转录组服务(如10x Genomics GEM-X单细胞转录组(V4.0)、10x Genomics单细胞转录组(V3.1)、10x单细胞转录组及TCR/BCR、墨卓单细胞转录组、DNBelab C-TaiM4单细胞转录组、10x HD空间转录组等),致力于为广大生命科学家、医学工作者提供基于多组学的科研及临床应用解决方案。累计协助客户在Advanced Functional Materials、ACS Nano、Nature Aging、Cancer Research、Neuron、Advanced Science、Experimental & Molecular Medicine、Journal of Nanobiotechnology、Cell Death and Disease等期刊发表SCI论文,并推出了广受好评的生信分析云平台【 https://analysis.obiosh.com/ 】,助您高效实现个性化数据挖掘!
